内容简介
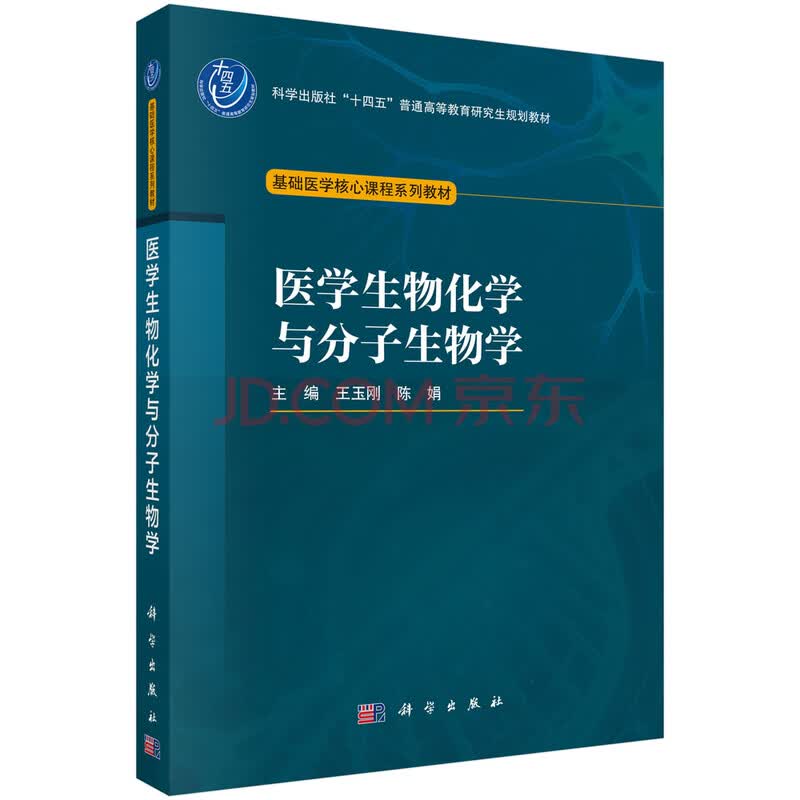
《医学生物化学与分子生物学》分为五篇,分别为基因与基因组、蛋白质、基因表达调控、物质代谢调节、分子医学研究常用技术,共计二十章。在内容上《医学生物化学与分子生物学》紧密结合现代生物医学研究需求,系统介绍当前主流的关键实验技术。不仅阐述原理,更着重讲解技术选择依据、实验方案设计思路、关键操作步骤要点、结果解读策略及常见问题分析与解决方案,力求成为研究生实验台上的实用指南。
目录
目录
**篇 基因与基因组
**章 基因、基因组学与转录组学 1
**节 基因与基因 1
第二节 基因组学 7
第三节 转录组学 10
第四节 基因组学和转录组学的医学应用 12
第二章 真核生物DNA复制及损伤与修复 14
**节 真核生物DNA复制及其调控 14
第二节 DNA的损伤与修复 23
第三节 DNA损伤修复缺陷与疾病 29
第三章 基因和基因组异常与疾病 32
**节 基因和基因组异常 32
第二节 疾病基因的定位 38
第三节 原癌基因异常与疾病 39
第四节 抑癌基因异常与疾病 41
第二篇 蛋白质
第四章 蛋白质的折叠与定位 47
**节 蛋白质的折叠与调控 47
第二节 蛋白质异常折叠的纠错机制 54
第三节 蛋白质定位的调控 58
第四节 蛋白质的异常定位与非**功能 61
第五章 蛋白质的修饰与降解 64
**节 蛋白质修饰类型 64
第二节 蛋白质修饰与蛋白质功能调控 71
第三节 蛋白质修饰的一般规律 73
第四节 蛋白质修饰与蛋白质降解 75
第六章 蛋白质的相互作用 79
**节 蛋白质复合体的形成与意义 79
第二节 蛋白质相互作用的结构基础 88
第三节 蛋白质相互作用的调控机制 94
第七章 蛋白质组学 99
**节 蛋白质组学的研究内容 99
第二节 蛋白质组学的研究策略 104
第三节 蛋白质组学的医学应用 108
第八章 蛋白质分子异常与疾病 111
**节 蛋白质异常与疾病 111
第二节 蛋白质定位异常与疾病 113
第三节 蛋白质修饰异常与疾病 115
第四节 蛋白质降解异常与疾病 118
第五节 蛋白质?蛋白质相互作用异常与疾病 121
第三篇 基因表达调控
第九章 真核基因表达染色质水平调控 123
**节 DNA甲基化修饰与基因表达调控 124
第二节 组蛋白修饰与基因表达调控 129
第三节 核小体动态构象变化与基因表达调控 138
第四节 染色质高级空间构象与基因表达调控 140
第十章 真核基因表达转录调控 144
**节 真核基因转录起始的调控 144
第二节 真核基因转录延长和转录终止的调控 153
第三节 真核基因转录后的调控 158
第四节 非编码RNA在真核基因转录调控中的作用 165
第十一章 真核基因表达的翻译调控 169
**节 真核基因翻译起始的调控 169
第二节 真核基因翻译延伸的调控 174
第三节 真核基因翻译终止的调控 178
第四节 非编码RNA调控蛋白质合成 182
第四篇 物质代谢调节
第十二章 糖代谢调节 186
**节 糖代谢调节的基本规律 187
第二节 糖代谢调节的重要信号途径 206
第三节 糖代谢异常与疾病 215
第十三章 脂代谢调节 220
**节 脂代谢的基本规律 220
第二节 脂代谢调节的重要信号途径 244
第三节 脂代谢异常与疾病 246
第十四章 氨基酸代谢调节 249
**节 蛋白质的基本特性与吸收转运 249
第二节 氨基酸的一般代谢及代谢调节 256
第三节 个别氨基酸代谢及调控 263
第四节 氨基酸代谢异常与疾病 277
第十五章 代谢组学 288
**节 代谢组学研究内容 288
第二节 代谢组学与机体代谢稳态 292
第三节 代谢组学的医学应用 296
第五篇 分子医学研究常用技术
第十六章 常用生物化学与分子生物学技术 303
**节 核酸分子杂交与印迹法 303
第二节 DNA测序技术 306
第三节 DNA重组技术 310
第四节 聚合酶链反应及其衍生技术 317
第五节 RNA干扰技术 321
第六节 生物芯片 323
第七节 生物大分子相互作用的研究技术 326
第十七章 单细胞组学技术 335
**节 单细胞组学概述 335
第二节 单细胞组学数据分析 345
第三节 单细胞组学的医学应用 349
第十八章 基因结构与功能分析 354
**节 基因结构与功能研究相关数据库 354
第二节 基因结构的分析 358
第三节 基因表达的分析 361
第四节 基因生物学功能的鉴定 365
第十九章 蛋白质结构与功能分析 368
**节 蛋白质生物信息学检索与比对分析 368
第二节 蛋白质结构解析 376
第三节 蛋白质功能分析 379
第四节 蛋白质改造和设计 382
第二十章 基因诊断与基因治疗 384
**节 基因诊断的基础与策略 384
第二节 基因治疗 391
参考文献 401
试读
**篇 基因与基因组
基因是遗传的基本单位,是控制生物性状的实体。了解基因的结构有助于理解基因的表达调控机制。基因组是指一个细胞或病毒颗粒所含DNA的全部序列,即遗传物质的总量。原核生物、真核生物及病毒基因组各有不同的结构特点。
DNA复制过程和参与的分子类型复杂,调控精确。各种内外因素所导致的生物体DNA组成与结构的变化可使DNA发生损伤,在长期的生物进化过程中,生物体细胞已形成自己的DNA损伤修复系统,生物体细胞DNA发生损伤的同时伴有DNA损伤修复系统的启动。当DNA发生不完全修复时,DNA则发生突变,可诱导细胞出现功能改变,或细胞发生恶性转化等生理病理变化。
疾病的发生是基因和环境因素之间相互作用的结果,不同疾病发生的分子机制各不相同,几乎所有疾病都都直接或间接地与基因有关。要探明疾病的发生发展机制,进而制定有效的预防和治疗方法,必须先找到致病基因。只有对致病基因有实质性的认识和了解,才能为阐明疾病发生发展机制筑牢理论基础。
本篇围绕基因、基因组学与转录组学,真核生物DNA复制及损伤与修复,基因和基因组异常与疾病三章内容进行学习,为深入学习后续章节奠定坚实的基础。
**章 基因、基因组学与转录组学
自然界所有生物的遗传信息都是以基因为基本单位贮存于核酸分子中的。基因(gene)是指储存编码RNA和蛋白质序列信息及表达这些信息所必需的核苷酸序列,而基因组(genome)则是一个生命单元(细胞或生物个体)携带的全部遗传信息,这些信息决定了生物体的发生、发展和各种生命现象的产生。随着整体分析技术的出现,近年来兴起的“组学”(omics)从组群或集合的角度整体检视生物体内各类分子的结构与功能及它们之间的相互联系。基因组学(genomics)的目标是阐明整个基因组的结构与功能及基因之间的相互作用,而转录组学则要全面了解基因组的整体转录情况及调控规律。本章重点介绍基因、基因组、转录组的概念,基因组学、转录组学研究内容与策略及其在医学上的应用。
**节 基因与基因组
DNA、RNA是基因的物质基础,基因一方面通过复制将遗传信息稳定传递给子代细胞;另一方面,基因通过表达(转录和翻译)将所携带的遗传信息表达为各种生物学性状(表型)。
一、基因
(一)基因的概念
1.遗传因子是基因的早期概念 1856~1864年,现代遗传学奠基人孟德尔(Mendel)通过豌豆杂交实验,提出了“遗传因子”(genetic factor)的概念,并对其基本性质作了*早的论述。Mendel根据实验结果认为,遗传性状是由成对的遗传因子决定的。在生殖细胞形成时,成对的遗传因子分离,分别进入两个生殖细胞中,这被后人称为孟德尔**定律或分离定律(law of segregation)。Mendel还认为,在生殖细胞形成时,不同对的遗传因子可以自由组合,即Mendel第二定律或自由组合定律(law of independent assortment)。这两个定律是Mendel遗传因子学说的中心内容。
1909年,丹麦植物学家威廉 约翰逊(William Johannsen)将Mendel的遗传因子改称为基因,并提出了基因型(genotype)和表型(phenotype)的概念。基因型是指逐代传递下去的成对因子的集合,因子中一个来源于父本,另一个来源于母本;表型则是指一些容易区分的个体特征的总和。自此,“基因”一词一直伴随着遗传学发展至今。
1910~1930年,美国生物学家摩尔根(Morgan)等通过果蝇性状的杂交实验,发现了基因连锁和交换现象,确立了遗传学的第三定律,即连锁定律(law of linkage),其成果总结为《基因论》。Morgan认为,基因是染色体上的实体;基因就像锁链一样,孤立地呈线状排列在染色体上;基因是染色体功能、突变和交换的*小单位。Morgan**次将代表某一特定性状的基因与某一特定的染色体联系起来,基因不再是代表某种性状的抽象符号,而是染色体上具有一定空间位置的实体。
2.转化现象的研究确定了基因的本质为DNA 肺炎球菌在揭示DNA作为遗传信息携带者的研究中发挥了极为重要的作用。1928年,英国医生弗雷德里克 格里菲斯(Frederick Griffith)发现非致病性粗糙型(R型)肺炎球菌可以转变为致病性光滑型(S型)肺炎球菌,他推测某种物质在两个菌株间发生了转移,从而使R型肺炎球菌获得了致病性。
1944年美国洛克菲勒(Rockefeller)医学研究所的奥斯瓦尔德 艾弗里(Oswald Avery)等在J Exp Med上发表了有关“转化因子”(transforming factor)化学本质的研究结果。他们利用灭活的S型肺炎球菌无细胞提取液进行了一系列分析,证实DNA就是S型肺炎球菌将其致病性转移给R型肺炎球菌的物质。这一工作成为生物化学发展史上的重要事件。在此之前,人们普遍认为蛋白质是遗传信息的携带者。Avery的工作为“基因是由DNA组成的”理论奠定了基础。
3.现代基因的概念不断完善与发展
(1)“一基因一酶”假说:1941年,美国科学家乔治 比德尔(George Beadle)和爱德华 塔特姆(Edward Tatum)以红色链孢霉(Neurospora crassa,粗糙链孢霉)为材料进行生化遗传研究,他们通过诱变获得了多种氨基酸和维生素营养缺陷突变体。这些突变基因不能产生某种酶,或只能产生有缺陷的酶。例如,有一个突变体不能合成色氨酸,是因为它不能产生色氨酸合成酶。两人在这一研究的基础上,提出了“一基因一酶”(one?gene?one enzyme)的假说。
(2)顺反子理论:1955年,美国物理学家西莫尔 本泽尔(Seymour Benzer)以T4噬菌体为材料,在DNA分子水平上研究基因内部的精细结构,提出了顺反子(cistron)、突变子(muton)和重组子(recon)的概念。Benzer认为,顺反子是一个遗传功能单位,实际上就是一个功能水平上的基因,一个顺反子决定一条多肽链,这就使“一基因一酶”的假说发展为“一基因一多肽”(one?gene?one polypeptide)的假说。能产生一种多肽的是一个顺反子,顺反子也就是基因的同义词。顺反子可以包含一系列突变单位(突变子)。突变子是DNA中构成基因的一个或若干个核苷酸。由于基因内的各个突变子之间有一定距离,所以彼此间能发生重组,这样,基因就有了第三个内涵——重组子。重组子代表一个空间单位,它有起点和终点,可以是若干个密码子的重组,也可以是单个核苷酸的互换。如果是后者,重组子也就是突变子。顺反子理论把基因具体化为DNA分子的一段序列,它负责传递遗传信息,是决定一条多肽链完整的功能单位;但它又是可分的,组成顺反子的核苷酸可以*自发生突变或重组,而且基因与基因之间还有相互作用。基因排列位置的不同,会产生不同的效应。
(3)操纵子模型:1961年,法国遗传学家弗朗索瓦 雅各布(Fran?ois Jacob)和雅克 莫诺(Jacques Monod)提出了原核基因表达调控机制——大肠埃希菌乳糖操纵子模型。该理论认为,很多生化功能上相关的结构基因在染色体上串联排列,由一个共同的控制区来操纵这些基因的转录。包含这些结构基因和控制区的整个核苷酸序列就称为操纵子(operon)。操纵子模型表明基因不但在结构上是可分的,而且在功能上也是有差别的,可分为负责编码蛋白质的结构基因(structural gene)和负责调节编码(结构)基因表达的调控基因(regulator gene)。
(4)现代基因的概念:20世纪70年代后,随着对基因作为遗传物质重要性的不断认识,基因结构与功能的研究一直是生命科学领域研究的重中之重,并引领着生命科学的发展方向。目前从分子生物学角度把基因定义为:基因是核酸分子中贮存遗传信息的基本单位,是RNA和蛋白质相关遗传信息的基本存在形式,是编码RNA和蛋白质多肽链序列信息及表达这些信息所必需的全部核苷酸序列。大部分生物中构成基因的核酸物质是DNA,少数生物(如RNA病毒等)中是RNA。这一概念确切地表述了基因的本质和功能。
(二)基因包含的序列
一个完整的基因由两部分构成:一是可以在细胞内表达为多肽链(蛋白质)或功能RNA的结构基因序列;二是为表达这些结构基因(合成RNA)所需要的启动子、增强子等调控序列。真核生物、原核生物基因组成各有其特点。
1.结构基因编码RNA和多肽链 结构基因决定自身表达产物RNA或多肽链的序列。有的结构基因仅编码一些有特定功能的RNA,如核糖体RNA(rRNA)、转运RNA(tRNA)、微RNA(microRNA,miRNA)等;而有的结构基因则通过信使RNA(mRNA)进一步编码蛋白质,编码蛋白质的结构基因中除含有一段贮存着一个特定多肽链一级结构的信息外,还存在一些与编码多肽链信息无关的DNA序列,如内含子和编码mRNA的非翻译区序列等,这些序列与mRNA的加工、翻译调控等有关。
一般来说,原核生物编码蛋白质的结构基因是连续的,而真核生物的结构基因则是不连续的,因而将真核生物的结构基因称为断裂基因(split gene)。如果将成熟的mRNA序列与其结构基因比较,可以发现并不是所有的结构基因序列都保留在成熟的mRNA分子中,有一些区段(序列)通过剪接(splicing)被去除了。在结构基因序列中,与成熟mRNA分子相对应的序列称为外显子(exon);位于外显子之间、在mRNA剪接过程中被删除部分相对应的序列则称为内含子(intron)。外显子与内含子相间排列,共同组成结构基因。
2.调控序列保证结构基因的表达 单个基因的组成结构中除了结构基因的编码序列之外,还包括对结构基因表达起调控作用的调控序列,如启动子、增强子、转录终止信号等。对一个基因的完整描述不仅针对它的编码区,同时也包括它的调控区。如果一个基因的调控区和结构基因位于同一染色体元件中的相邻部位,这种调节方式称为顺式调节(cis?regulation),相应的DNA序列称为顺式调控元件或称顺式作用元件(cis?acting element)。顺式作用元件的作用需通过结合相应的蛋白质因子(多为转录因子)方可实现,而这些蛋白质一般由位于另外的染色体或同一染色体远距离部位的基因来编码,因而被称为反式作用因子(trans?acting factor)。反式作用因子通过直接结合或间接作用于DNA,对基因表达发挥不同作用(促进或阻遏)。
3.原核生物基因的调控序列 原核生物基因调控序列*主要的有启动子(promoter)和终止子(terminator)。在不同的基因中尚有可被其他调节蛋白(阻遏蛋白或激活蛋白)所识别和结合的顺式作用元件。
(1)启动子提供转录起始信号:启动子是指与DNA依赖的RNA聚合酶(RNA polymerase,RNA pol)相结合的一段DNA序列(20~300bp),包括RNA pol识别位点和mRNA转录起始位点,其功能是提供转录起始信号,使RNA聚合酶能够起始转录生成目的基因的mRNA。启动子具有方向性,一般位于结构基因转录起始位点的上游。不同基因间的启动子序列存在一定保守性,称为一致性序列(consensus sequence)或共有序列。启动子序列本身不出现于RNA产物中,仅提供转录起始信号。大肠埃希菌启动子区的长度为40~60bp,至少包括3个功能区:①RNA合成的起点,即+1碱基;②位于?10bp区的RNA pol结合部位,由6~8bp组成,富含A、T,称为TATA盒(TATA box),又称普里布诺(Pribnow)盒或?10元件;③转录起始识别位点(recognition site),位于?35bp区,共有序列是TTGACA。尽管存在着上述共有序列,但原核生物